LES CHLOROPHYTA.
LES CHLOROPHYTA
Les algues vertes : la lignée qui a donné naissance aux plantes terrestres
Les Chlorophyta sont un grand phylum d’algues vertes appartenant au règne Viridiplantae. Elles regroupent des organismes unicellulaires, coloniales, filamenteux, ou pluricellulaires, vivant principalement en eaux douces, mais aussi en milieux marins et terrestres humides.
Ce phylum représente la lignée verte qui a conduit à l’évolution des Embryophytes (plantes terrestres).
Les Chlorophytes (Chlorophyta) sont une division des Plantae. Elles comprennent une partie de ce que l’on appelle communément les algues vertes, l'autre partie étant représenté par le groupe paraphylétique des Charophyta.
1. Caractères généraux
Pigments
- Chlorophylle a + b (signature des algues vertes et des plantes)
- Caroténoïdes : β‑carotène, lutéine → couleur vert franc, sans teinte brune ou dorée.
Réserves
- Amidon (stocké dans les chloroplastes) → caractère fondamental des Viridiplantae.
Chloroplastes
- Formes variées : cupule, spirale, étoile, réseau, ruban.
- Présence fréquente d’un pyrénoïde (stockage d’amidon).
Paroi
- Cellulosique, parfois mucilagineuse.
Flagelles
- Quand présents : 2 flagelles égaux (isocontes). → distinction avec les straménopiles (flagelle à mastigonèmes).
2. Habitat
Les Chlorophyta sont très diversifiés :
Eaux douces (majoritaires)
- Étangs, lacs, rivières, fossés, mares
- Biofilms, mousses, sols humides
Milieux marins
- Zones côtières, récifs, plancton marin
Milieux extrêmes
- Neige (algues cryophiles)
- Sources chaudes
- Eaux acides
- Rochers humides
3. Rôle écologique
- Production primaire dans les eaux douces.
- Base de nombreuses chaînes alimentaires.
- Indicateurs de qualité de l’eau (nutriments, pollution).
- Certaines espèces forment des efflorescences vertes (blooms).
4. Reproduction
Asexuée
- Division cellulaire
- Fragmentation
- Zoospores flagellées
Sexuée
- Isogamie
- Anisogamie
- Oogamie → selon les groupes
Kystes
- Formes de résistance chez plusieurs espèces.
5. Diversité morphologique
Les Chlorophyta présentent une diversité remarquable :
Unicellulaires
- Chlamydomonas
- Chlorella
- Micrasterias (desmidiées)
Coloniales
- Volvox
- Gonium
Filamenteuses
- Ulothrix
- Oedogonium
Siphonées (géantes, sans cloisons)
- Caulerpa
- Codium
Desmidiées
- Formes symétriques, très décorées, typiques des eaux acides.
6. Classification interne (version académique)
Phylum : Chlorophyta
- Classe Chlorophyceae (algues vertes classiques : Chlamydomonas, Volvox, Oedogonium)
- Classe Ulvophyceae (formes marines : Ulva, Caulerpa, Codium)
- Classe Trebouxiophyceae (algues symbiotiques des lichens : Trebouxia)
- Classe Prasinophyceae (microalgues basales : Micromonas, Pyramimonas)
- Classe Charophyceae (lignée sœur des plantes terrestres : Chara, Nitella)
Résumé essentiel
Les Chlorophyta sont des algues vertes à chlorophylle a + b, très diversifiées, vivant surtout en eaux douces, jouant un rôle majeur dans la production primaire, la qualité des eaux, et les réseaux trophiques. Elles constituent la lignée verte ayant donné naissance aux plantes terrestres.
Morphologie
Les chlorophytes sont des organismes eucaryotes composés de cellules dotées de divers types d'enveloppes ou de parois, et possédant généralement un unique chloroplaste vert par cellule. Leur structure est variée : la plupart des groupes de chlorophytes sont unicellulaires, comme les prasinophytes (le groupe le plus basal), mais deux classes majeures (les Chlorophyceae et les Ulvophyceae) présentent une tendance évolutive vers divers types de colonies complexes, voire vers la multicellularité.
Chloroplastes
Les cellules des chlorophytes contiennent des chloroplastes verts entourés d'une enveloppe à double membrane. Ces chloroplastes renferment de la chlorophylle a et b, ainsi que des caroténoïdes tels que le carotène, la lutéine, la zéaxanthine, l'anthéraxanthine, la violaxanthine et la néoxanthine — des pigments également présents dans les feuilles des plantes terrestres. Certains caroténoïdes spécifiques sont présents dans certains groupes ou synthétisés en réponse à des facteurs environnementaux particuliers ; c'est le cas de la siphonaxanthine, de la prasinoxanthine, de l'échinénone, de la canthaxanthine, de la loroxanthine et de l'astaxanthine. Ces algues accumulent des caroténoïdes en cas de carence en azote, de forte irradiance solaire ou de salinité élevée. De plus, elles stockent de l'amidon à l'intérieur du chloroplaste sous forme de réserve glucidique. Les thylakoïdes peuvent être isolés ou empilés. Contrairement à d'autres divisions d'algues comme les Ochrophyta, les chlorophytes sont dépourvues de réticulum endoplasmique chloroplastique.
Appareil flagellaire
Les chlorophytes produisent souvent des cellules flagellées dotées généralement de deux ou quatre flagelles de longueur égale ; toutefois, chez les prasinophytes, il est fréquent d'observer des flagelles hétéromorphes (c'est-à-dire de formes différentes) au sein d'une même cellule, reflétant divers stades de maturation flagellaire. La capacité à produire des flagelles a été perdue indépendamment dans certains groupes, comme les Chlorococcales. Les cellules flagellées des chlorophytes possèdent des systèmes de racines flagellaires symétriques en forme de croix (« cruciformes »), où des racines ciliaires comportant un nombre élevé et variable de microtubules alternent avec des racines composées de seulement deux microtubules. Cela forme une disposition connue sous le nom de configuration « X-2-X-2 », propre aux chlorophytes. Ils se distinguent également des streptophytes par le point d'insertion de leurs flagelles : directement à l'apex de la cellule, alors que chez les streptophytes, les flagelles s'insèrent sur les côtés de l'apex (position subapicale).
Sous l'appareil flagellaire des prasinophytes se trouvent des rhizoplastes, des structures contractiles analogues à des muscles qui se connectent parfois au chloroplaste ou à la membrane cellulaire. Chez les chlorophytes du groupe central, cette structure se connecte directement à la surface du noyau.
La surface des flagelles est dépourvue de poils microtubulaires, mais certains genres présentent des écailles ou des poils fibrillaires. Les groupes les plus basaux possèdent souvent des flagelles recouverts d'au moins une couche d'écailles, voire nus.
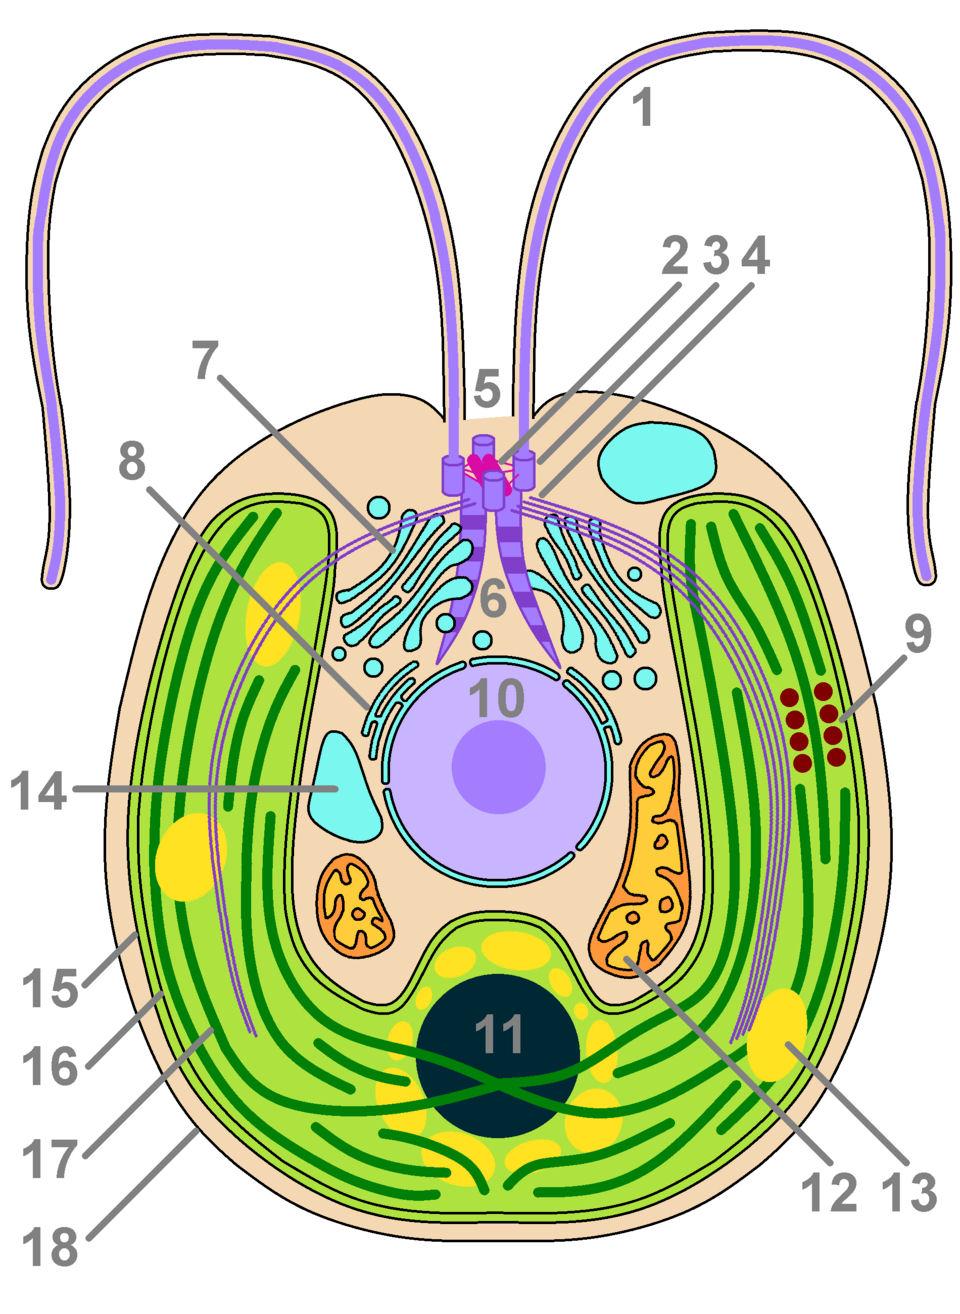
Schéma simplifié d'une cellule de chlorophytes regroupant des structures observées au sein de l'embranchement : 1) flagelle; 2) synistosome avec des fibres fixées à une paire de corpuscules basaux ; 3) racine microtubulaire appartenant à la disposition « X-2-X-2 », ici 4-2-4-2 (seules les racines orientées vers l'avant sont représentées) ; 5) dépression flagellaire (seuls deux des quatre flagelles sont représentés) ; 6) rhizoplastes ; 7) appareil de Golgi ; 8) réticulum endoplasmique et enveloppe nucléaire ; 9) stigma ; 10) noyau avec nucléole; 11) pyrénoïde ; 12) mitochondrie ; 13) grain d'amidon ; 14) vacuole; 15) membrane externe du chloroplaste ; 16) membrane interne du chloroplaste ; 17) thylakoïde ; 18) membrane plasmique.
Métabolisme
Les chlorophytes et les streptophytes diffèrent par les enzymes et les organites impliqués dans la photorespiration. Les algues chlorophytes utilisent une déshydrogénase située dans les mitochondries pour traiter le glycolate lors de la photorespiration. En revanche, les streptophytes (y compris les plantes terrestres) utilisent des peroxysomes contenant de la glycolate oxydase, qui transforme le glycolate en glyoxylate ; le peroxyde d'hydrogène produit comme sous-produit est alors réduit par des catalases situées dans ces mêmes organites.
Reproduction et cycle de vie
La multiplication végétative est largement répandue chez les chlorophytes. Parmi les chlorophytes du groupe central, les groupes unicellulaires peuvent se reproduire de manière asexuée par la formation d'autospores, de zoospores dépourvues de paroi, par fragmentation, par simple division cellulaire et, exceptionnellement, par bourgeonnement. Les thalles multicellulaires peuvent se reproduire de façon asexuée via des zoospores mobiles, des aplanospores immobiles, des autospores, la fragmentation de filaments, des cellules de repos différenciées, voire des gamètes non fécondés. Les groupes coloniaux peuvent se reproduire de manière asexuée par la formation d'autocolonies : chaque cellule se divise pour former une colonie présentant le même nombre et la même disposition de cellules que la colonie mère.
De nombreuses chlorophytes se reproduisent exclusivement de manière asexuée, mais certaines présentent une reproduction sexuée pouvant être isogame (les gamètes des deux sexes sont identiques), anisogame (les gamètes diffèrent) ou oogame (les gamètes sont des spermatozoïdes et des ovules), avec une tendance évolutive vers l'oogamie. Leurs gamètes sont généralement des cellules spécialisées, différenciées des cellules végétatives, bien que chez les Volvocales unicellulaires, les cellules végétatives puissent fonctionner simultanément comme des gamètes. La plupart des chlorophytes ont un cycle de vie diplontique (ou zygotique), où les gamètes fusionnent pour former un zygote qui germe, croît et finit par subir une méiose pour produire des spores haploïdes (ou gamètes), à l'instar des ochrophytes et des animaux. Quelques exceptions présentent un cycle de vie haplodiplontique, caractérisé par une alternance de générations, semblable à celui des plantes terrestres. Ces générations peuvent être isomorphes (de forme et de taille similaires) ou hétéromorphes. La formation des cellules reproductrices ne se produit généralement pas dans des cellules spécialisées, mais certaines Ulvophyceae possèdent des structures reproductrices dédiées : des gamétanges pour produire des gamètes et des sporanges pour produire des spores.
Les chlorophytes unicellulaires les plus précoces sur le plan évolutif (les prasinophytes) produisent, avant la reproduction, des stades de résistance dotés d'une paroi, appelés kystes ou stades « phycoma » ; chez certains groupes, ces kystes peuvent atteindre 230 μm de diamètre. Pour les former, les cellules flagellées élaborent une paroi interne en expulsant des vésicules de mucilage vers l'extérieur, augmentent leur teneur en lipides cytoplasmiques pour améliorer leur flottabilité et finissent par développer une paroi externe. À l'intérieur des kystes, le noyau et le cytoplasme se divisent pour donner naissance à de nombreuses cellules flagellées, libérées par rupture de la paroi. Chez certaines espèces, il a été confirmé que ces cellules filles sont des gamètes ; en dehors de ces cas, la reproduction sexuée reste inconnue chez les prasinophytes.
Écologie
Vie libre
Les chlorophytes constituent une part importante du phytoplancton, tant en eau douce qu'en milieu marin, fixant plus d'un milliard de tonnes de carbone chaque année. Elles existent également sous forme de macroalgues multicellulaires (ou algues marines) fixées aux rivages rocheux. La plupart des espèces de Chlorophyta sont aquatiques et abondent aussi bien dans les environnements marins qu'en eau douce. Environ 90 % de toutes les espèces connues vivent en eau douce. Certaines espèces se sont adaptées à une grande variété d'environnements terrestres. Par exemple, Chlamydomonas nivalis vit dans les névés alpins en été, tandis que les espèces du genre Trentepohlia vivent fixées sur des rochers ou sur les parties ligneuses des arbres. Plusieurs espèces se sont adaptées à des environnements spécialisés et extrêmes, tels que les déserts, les zones arctiques, les habitats hypersalins, les eaux marines profondes, les sources hydrothermales abyssales et les milieux soumis à des variations extrêmes de température, de luminosité et de salinité. Certains groupes, comme les Trentepohliales, sont exclusivement terrestres.
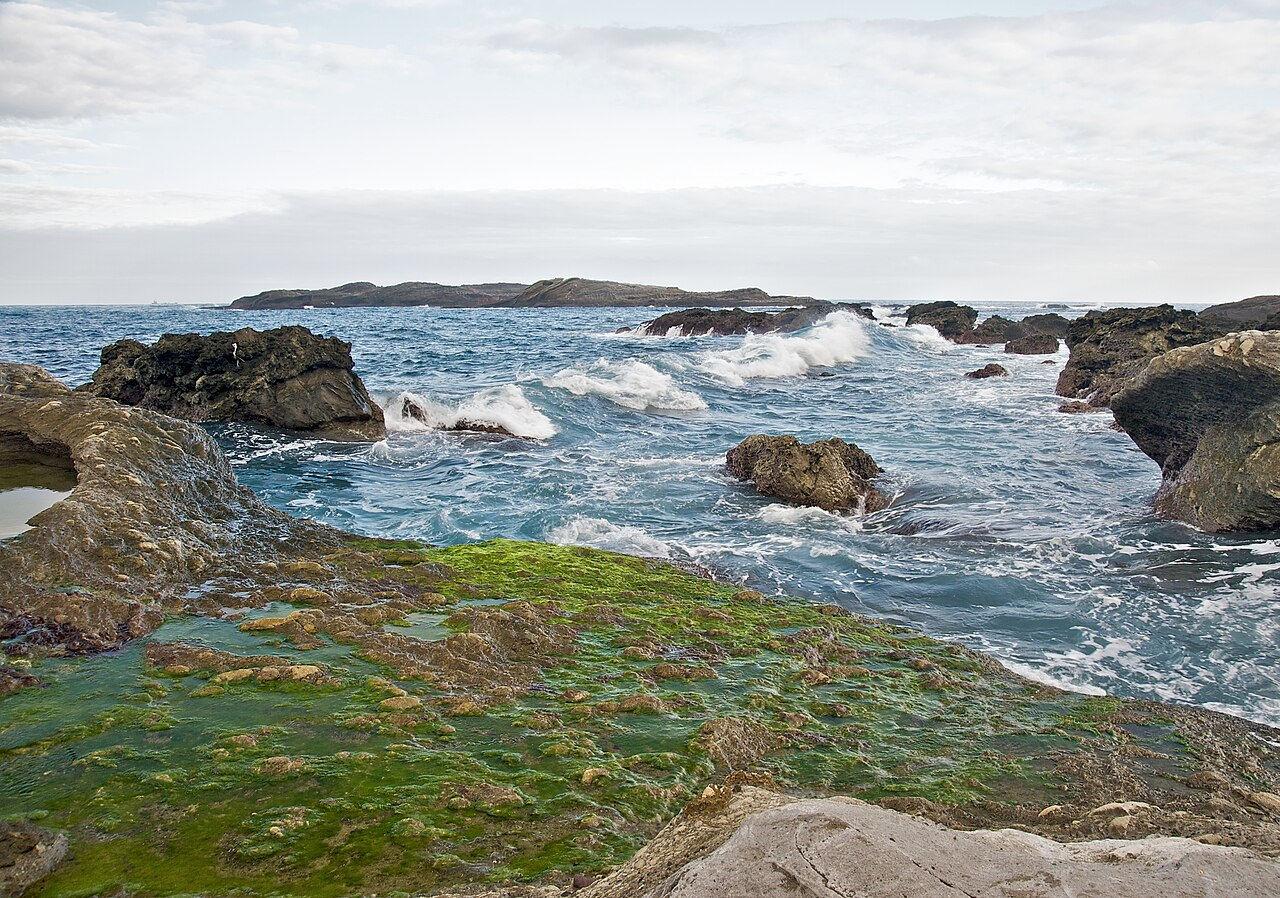
Algues vertes sur les rochers côtiers de Shihtiping, à Taïwan
Symbiontes
Plusieurs espèces de Chlorophytes vivent en symbiose avec divers eucaryotes, notamment des champignons (pour former des lichens), des ciliés, des foraminifères, des cnidaires et des mollusques. Certaines espèces de Chlorophytes sont hétérotrophes, menant une vie libre ou parasitaire. D'autres sont mixotrophes et se nourrissent de bactéries par phagocytose. Deux espèces courantes de l'algue verte hétérotrophe Prototheca sont pathogènes et peuvent provoquer la protothécose chez l'homme et l'animal.
À l'exception des trois classes du clade UTC (Ulvophyceae, Trebouxiophyceae et Chlorophyceae), qui présentent divers degrés de multicellularité, toutes les lignées de Chlorophytes sont unicellulaires. Certains membres du groupe nouent des relations symbiotiques avec des protozoaires, des éponges et des cnidaires. D'autres s'associent à des champignons pour former des lichens, mais la majorité des espèces mènent une vie libre. Tous les membres de ce clade possèdent des cellules nageuses mobiles munies de flagelles. Monostroma kuroshiense, une algue verte comestible cultivée dans le monde entier et considérée comme la plus coûteuse de sa catégorie, appartient à ce groupe.
Classification
Historique taxonomique
La première mention du terme Chlorophyta revient au botaniste allemand Heinrich Gottlieb Ludwig Reichenbach dans son ouvrage de 1828, Conspectus regni vegetabilis. Sous ce nom, il regroupait toutes les algues, les mousses ('musci') et les fougères ('filices'), ainsi que certaines plantes à graines (Zamia et Cycas). Cet usage ne s'est pas imposé. En 1914, le botaniste bohémien Adolf Pascher a modifié le terme pour désigner exclusivement les algues vertes, c'est-à-dire les algues contenant des chlorophylles a et b et stockant de l'amidon dans leurs chloroplastes. Pascher a établi un système dans lequel les Chlorophyta comprenaient deux groupes : les Chlorophyceae, incluant les algues aujourd'hui connues sous le nom de Chlorophyta, et les Conjugatae, aujourd'hui appelées Zygnematales et rattachées au clade des Streptophyta, dont sont issues les plantes terrestres.
Au cours du XXe siècle, de nombreux systèmes de classification différents ont été proposés pour les Chlorophyta. Le système de Smith, publié en 1938 par le botaniste américain Gilbert Morgan Smith, distinguait deux classes : les Chlorophyceae, regroupant toutes les algues vertes (unicellulaires et pluricellulaires) ne se développant pas à partir d'une cellule apicale ; et les Charophyceae, incluant uniquement des algues vertes pluricellulaires se développant via une cellule apicale et possédant des enveloppes stériles spécifiques protégeant les organes reproducteurs.
Avec l'avènement de la microscopie électronique, les botanistes ont publié diverses propositions de classification fondées sur des structures et des phénomènes cellulaires plus fins, tels que la mitose, la cytokinèse, le cytosquelette, les flagelles et les polysaccharides de la paroi cellulaire. En 1971, le botaniste britannique Frank Eric Round a proposé un système distinguant les Chlorophyta des autres divisions d'algues vertes : Charophyta, Prasinophyta et Euglenophyta. Il y incluait quatre classes de chlorophytes : Zygnemaphyceae, Oedogoniophyceae, Chlorophyceae et Bryopsidophyceae. D'autres propositions conservaient une définition des Chlorophyta incluant toutes les algues vertes, mais différaient quant au nombre de classes retenues. Par exemple, la proposition de Mattox et Stewart (1984) en comptait cinq, celle de Bold et Wynne (1985) seulement deux, tandis que celle de Christiaan van den Hoek et de ses coauteurs (1995) en dénombrait jusqu'à onze.
L'usage moderne du nom « Chlorophyta » a été établi en 2004, lorsque les phycologues Lewis et McCourt ont nettement distingué les chlorophytes des streptophytes sur la base de la phylogénétique moléculaire. Toutes les algues vertes plus étroitement apparentées aux plantes terrestres qu'aux chlorophytes ont été regroupées au sein de la division paraphylétique des Charophyta.
Au sein des algues vertes, les lignées divergeant le plus précocement ont été regroupées sous le nom informel de « prasinophytes », et l'on pensait alors qu'elles appartenaient toutes au clade des Chlorophyta. Toutefois, une étude publiée en 2020 a mis en évidence un nouveau clade et une nouvelle division, nommés Prasinodermophyta, incluant deux lignées de prasinophytes auparavant considérées comme des chlorophytes. Le cladogramme ci-dessous illustre l'état actuel de la classification des algues vertes :
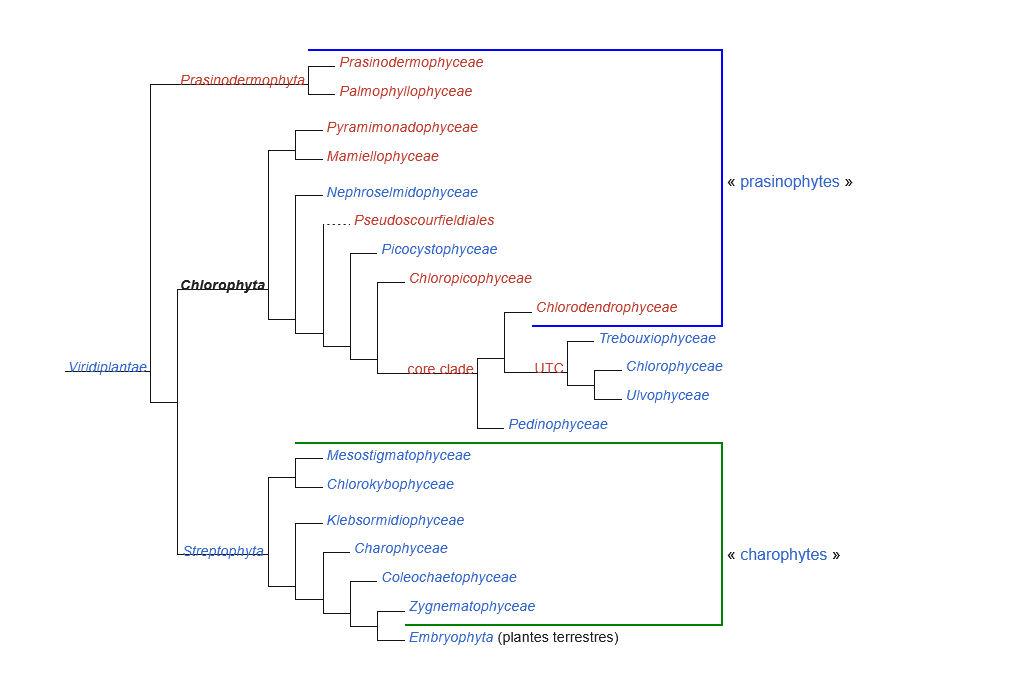
Liste des classes et des sous-divisions
On reconnaît actuellement onze classes de chlorophytes :
- Classe des Chlorodendrophyceae Massjuk (60 espèces, 15 éteintes)
- Classe des Chlorophyceae Wille (3 974 espèces)
- Classe des Chloropicophyceae (8 espèces)
- Classe des Chuariophyceae (3 espèces éteintes)
- Classe des Mamiellophyceae Marin & Melkonian (25 espèces)
- Classe des Nephroselmidophyceae T. Cavalier-Smith (29 espèces)
- Classe des Pedinophyceae Moestrup (24 espèces)
- Classe des Picocystophyceae (1 espèce)
- Classe des Pyramimonadophyceae (166 espèces, 59 éteintes)
- Classe des Trebouxiophyceae Friedl (926 espèces, 1 éteinte)
- Classe des Ulvophyceae K.R. Mattox & K.D. Stewart (2 695 espèces, 990 éteinte)
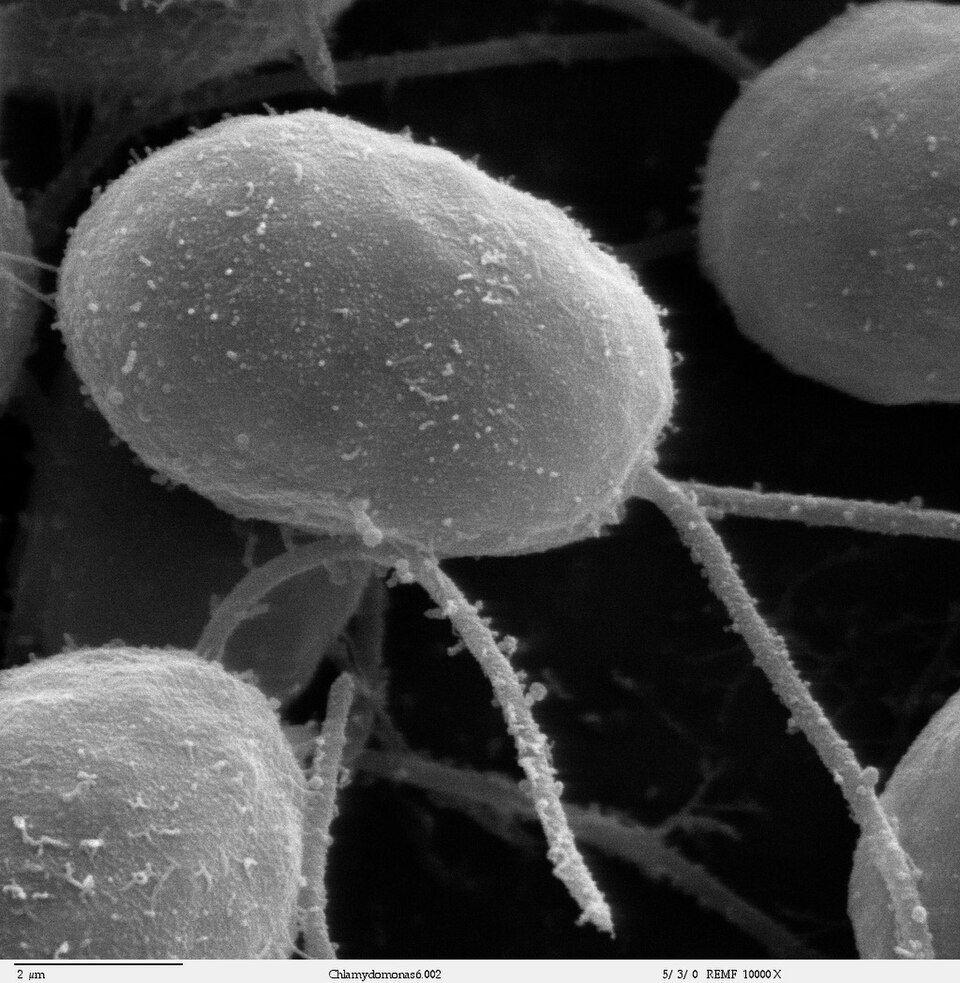
Une algue de la classe des Chlorophyceae : Chlamydomonas (grossie ×10 000)
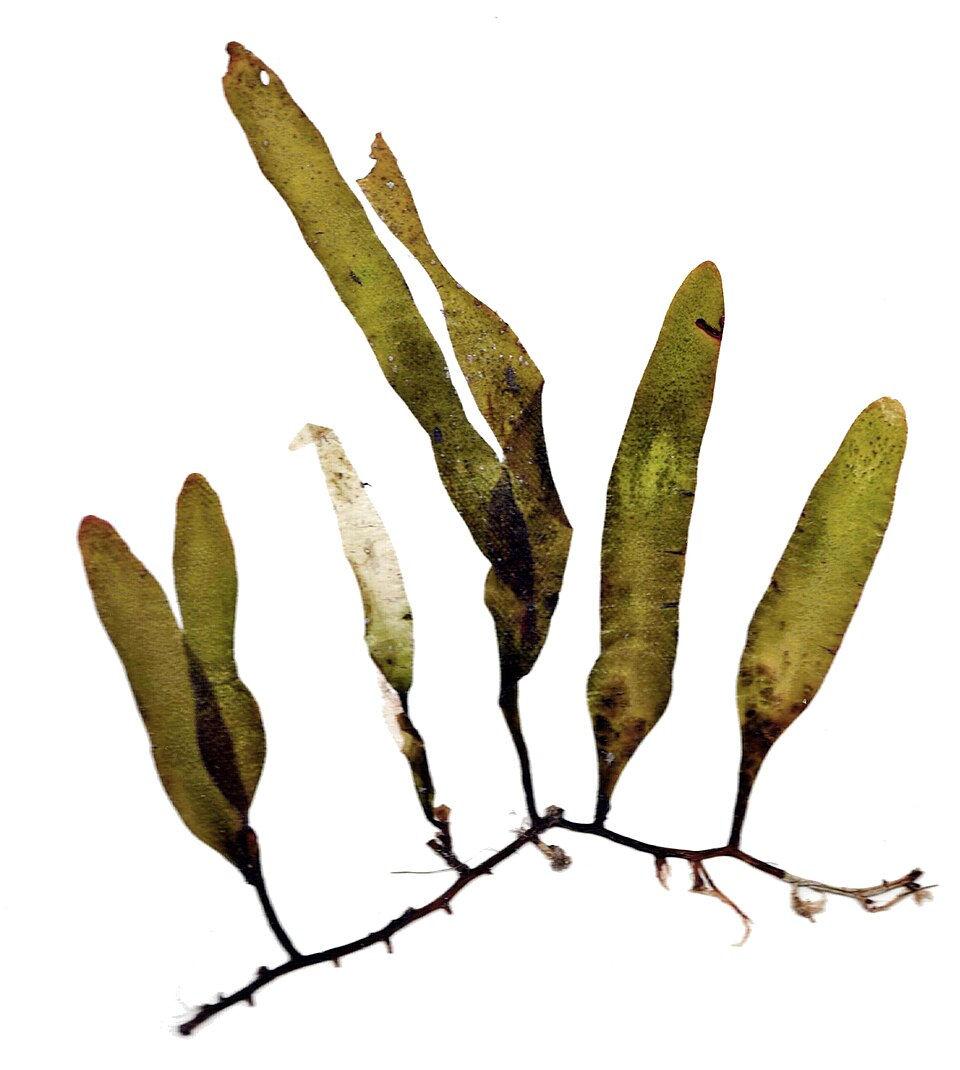
Une algue de la classe des Ulvophyceae : Caulerpa prolifera
Évolution
En février 2020, les plus anciens fossiles d'algues vertes nommées Proterocladus antiquus, qui vivaient dans un océan peu profond, restes datés d'un milliard d'années, ont été découverts dans la province du Liaoning, en Chine. Toutes les plantes terrestres, jusqu'aux plus grands arbres, auraient évolué à partir des plantes aquatiques qu'étaient les algues. Selon une étude parue dans la revue Nature Ecology & Evolution la découverte de Proterocladus antiquus plaide en faveur d'une origine océanique des algues vertes, contre l'hypothèse selon laquelle les algues vertes aquatiques seraient d'abord apparues dans des environnements d’eau douce - lacs ou rivières, avant de coloniser l’océan et toute la surface terrestre. En 2023, une étude a calculé l'âge moléculaire des algues vertes en le calibrant à partir de ce fossile. L'étude a estimé l'origine des Chlorophyta au cours du Mésoprotérozoïque, il y a environ 2,04 à 1,23 milliard d'années.
Génie génétique
En 2016, trois chercheurs (chinois, allemand et égyptien) ont démontré qu'il est possible en laboratoire de fusionner les protoplastes d'espèces d'algues différentes et de provoquer une recombinaison génétique ; le phénomène a été expérimenté entre Haematococcus pluvialis (Chlorophyta) et Ochromonas danica (Chrysophyta).
Date de dernière mise à jour : 27/09/2026
Ajouter un commentaire